Inactivación microbiana por far-UVC a 222 nm: revisión sistemática y síntesis de dosis-respuesta en aire, agua, superficies y biopelículas
Microbial inactivation by 222-nm far-UVC: a systematic review and dose-response synthesis in air, water, surfaces and biofilms
MedETechni, Santiago, Chile
Original publicado
Resumen
Antecedentes. Las estimaciones de eficacia de far-UVC de 222 nm varían por órdenes de magnitud. Las diferencias de matriz, estado microbiano, medición de dosis, hombros y colas suelen reducirse indebidamente a un único valor de "susceptibilidad". Esta revisión sistemática integró un mapa de evidencia y evaluó la viabilidad de estimar una D90 agrupada.
Métodos. Revisión sistemática retrospectiva de un corpus seleccionado. Se amplió una base de 81 informes y una actualización dirigida de 19 con textos completos recuperados el 2 de octubre de 2026. Se exigió un brazo nominal separable de 222±2 nm y un desenlace viable o de infectividad. Su y Sheng se incluyeron; Chen quedó contextual y Liu como revisión secundaria. La D90 preservó la base logarítmica y las curvas completas; los modelos alternativos de Sheng se conservaron como sensibilidad. La selección y extracción fueron asistidas por IA y ratificadas por dos revisores.
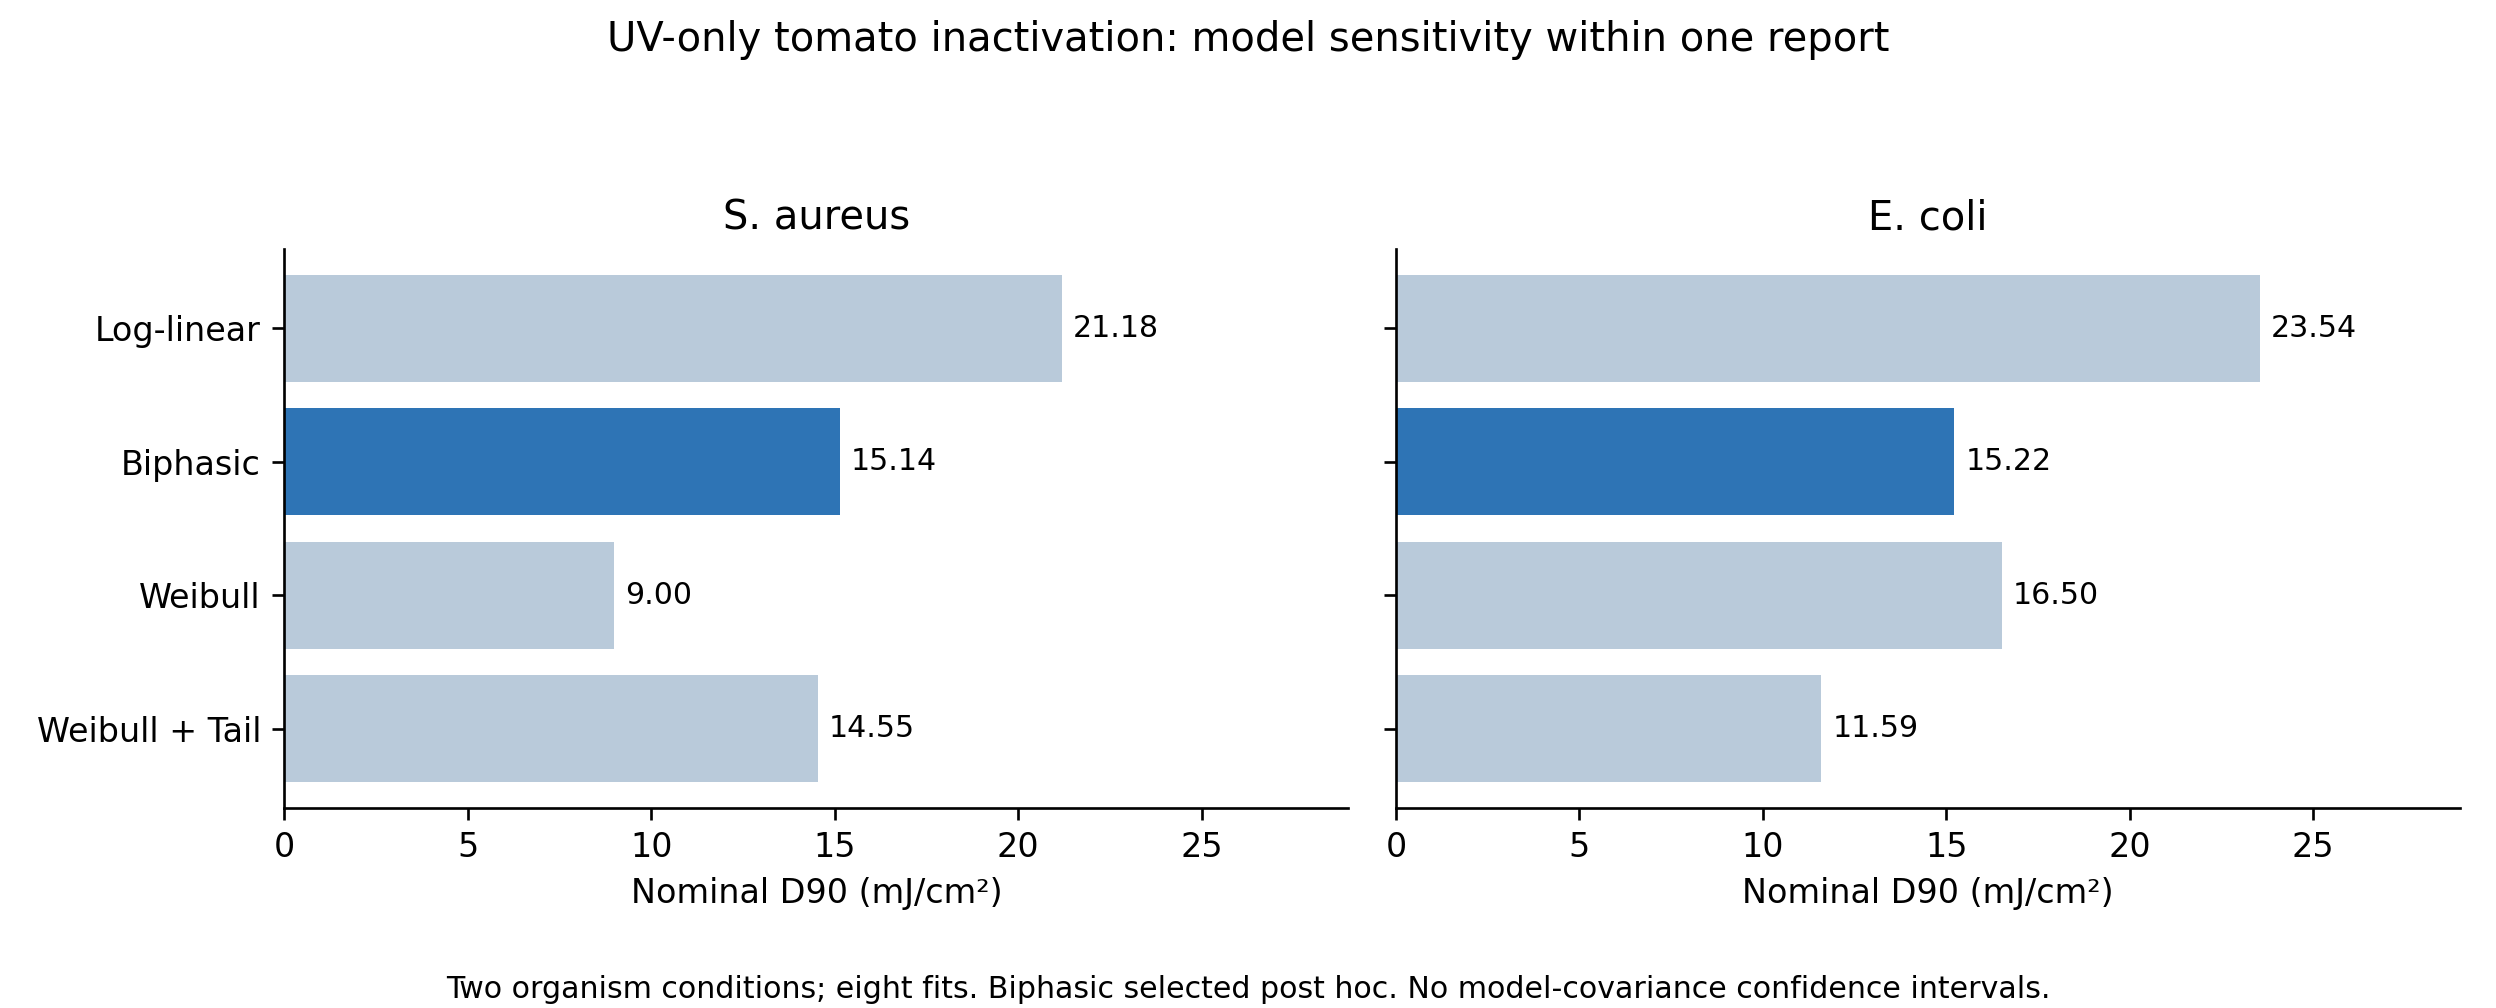
Resultados. El mapa integrado contiene 103 informes, 63 inclusiones y 51 condiciones D90 de seis informes. Las 57 estimaciones de modelo incluyen cuatro ajustes por organismo en Sheng, no ocho condiciones independientes. Los modelos de MRSA de Su producen D90 de 4,74 mJ/cm² (IC95% condicional transformado 4,08–5,65) en sábanas y 16,95 (14,08–21,28) en mantas. Los modelos bifásicos de UV aislada de Sheng producen D90 nominal de 15,14 y 15,22 mJ/cm² para S. aureus y E. coli, sin covarianza recuperable. El modelo completo basal de McDonald da 8,30 mJ/cm² frente a 1,86 por pendiente; cuatro objetivos D90 de Petersen permanecen inalcanzables bajo las mesetas ajustadas. Ningún estrato cumplió la regla de metaanálisis.
Conclusiones. Conservar la curva completa modificó la D90 de 1,86 a 8,30 mJ/cm² en McDonald e identificó cuatro objetivos inalcanzables en Petersen. La síntesis explica diferencias entre estimaciones mediante comparaciones específicas por matriz y modelo; no establece una dosis universal ni eficacia clínica.
Puntos clave
Pregunta. ¿Es defendible combinar las estimaciones de dosis–respuesta de far-UVC de 222 nm entre microorganismos, matrices y modelos distintos?
Hallazgos. El mapa contiene 103 informes, 63 inclusiones y 51 condiciones cuantitativas de seis informes; las 57 estimaciones de modelo conservan su agrupación. Ningún estrato cumplió la regla de metaanálisis.
Significado. Conservar matriz, modelo y unidad experimental permite comparar estimaciones compatibles y reconocer cuándo una D90 agregada carece de fundamento físico o estadístico.
Resumen ciudadano
Los resultados de la luz de 222 nanómetros varían según el microorganismo, el material y el modelo utilizado para analizar la respuesta. Esta revisión sistemática organiza las condiciones experimentales y muestra que conservar las curvas completas cambia algunas estimaciones. Su aporte es explicar esas diferencias con cálculos reproducibles, en lugar de asignar una dosis única a situaciones distintas. Los resultados describen inactivación experimental y no evalúan curación de heridas ni seguridad humana.
Introducción
Las fuentes excímeras de kriptón–cloro que emiten principalmente a 222 nm se investigan como controles microbianos continuos o intermitentes. La literatura incluye bacterias, virus, hongos y esporas en ensayos de banco, cámaras, habitaciones ocupadas, transporte y áreas clínicas. No obstante, estos resultados no constituyen una sola población física: la radiación alcanza viriones, células vegetativas, esporas, gotas, depósitos secos, suspensiones y biofilms con absorción, sombreado, agregación, reparación y recuperación distintos. [4–12,15,19–22,26,27]
En un modelo log-lineal S(D)=exp(−kD), D90=ln(10)/k. Esa identidad deja de representar la dosis total desde D=0 cuando existe un hombro, y puede subestimar marcadamente la dosis cuando la supervivencia es biexponencial. Si la fracción resistente ajustada es al menos 0,10 y se fija k2=0, una reducción de un log ni siquiera es identificable dentro del modelo.
Esta revisión sistemática organiza la evidencia por taxón y matriz, e incorpora la calidad dosimétrica y las cinéticas no lineales. El análisis separado de biofilms y de estimaciones físicamente compatibles permite examinar diferencias que se pierden al agrupar condiciones heterogéneas.
Métodos
Diseño y temporalidad del protocolo
Revisión sistemática retrospectiva de un corpus seleccionado, con mapa de evidencia, síntesis cuantitativa y reporte SWiM sin metaanálisis. El protocolo del 2 de septiembre de 2026 se documentó después de conocer la semilla de 81 informes. El ciclo analizado y la búsqueda de octubre no tuvieron registro prospectivo; sus exportaciones se conservaron en el expediente. [1-3]
Elegibilidad, fuentes y selección
Se incluyeron estudios primarios con una fuente de pico nominal 222±2 nm y reducción viable o infectividad interpretable. Los brazos a 207, 233, 254 o 275 nm quedaron fuera de la síntesis primaria salvo que existiera un brazo separable a 222 nm. El primer ciclo incorporó los 81 informes de HF06 y 19 registros históricos o de actualización: 46 y 15 fueron elegibles, respectivamente, con 35 y cuatro exclusiones. La recuperación de octubre añadió Su y Sheng como inclusiones primarias y Chen como contexto: 103 informes, 63 inclusiones y 40 exclusiones o registros contextuales. Liu ya estaba en E016 y no se contó de nuevo. La búsqueda partió de una semilla conocida. Dos revisores ratificaron la selección y el cotejo de las 51 condiciones y 57 estimaciones con sus fuentes, incluidos Su y Sheng.
Extracción y armonización
El esquema registra microorganismo, matriz, inóculo, dosimetría, ensayo viable, límite de detección, modelo, constantes, incertidumbre y D90. Los campos no disponibles permanecen vacíos. Las condiciones de un mismo artículo no se trataron como estudios independientes.
Log-lineal. D90=ln(10)/k para k natural; D90=1/k si la pendiente está en escala log10.
Con hombro. ln(10)/k describe el tramo lineal; el hombro se suma únicamente si la parametrización publicada lo permite.
Biexponencial. Se resolvió S(D)=(1−f)exp(−k1D)+f exp(−k2D)=0,10. Si k2=0 y f≥0,10, la D90 se declaró no identificable.
Conversión de puntos finales. La D90 directa publicada tiene prioridad. D99,9/3 es una aproximación alternativa compatible solo con un modelo log-lineal; no se utilizó esta aproximación para las estimaciones de Buonanno.
Censura. Los valores bajo el límite de detección no se convirtieron en números exactos.
Regla para metaanálisis y calidad
La regla de síntesis se definió para log(D90), REML e intervalos Hartung–Knapp, con estructura multinivel o varianza robusta para condiciones agrupadas por estudio. La regla fijó un mínimo de tres estudios independientes por estrato matriz–organismo. Ningún estrato actual cumplió esa regla. La calidad evalúa espectro y filtro, calibración, geometría y correcciones, replicación, viabilidad y límite de detección, controles, cobertura de dosis/modelo y conflictos.
Actualización de fuentes y modelos
La búsqueda complementaria reunió 27.570 registros y 21.904 candidatos deduplicados, conservados como archivo de descubrimiento y separados del corpus evaluado. La búsqueda previa en PubMed y Europe PMC contenía 4.850 entradas. La incorporación de tres informes llevó el mapa a 103 informes, con 63 inclusiones y 40 exclusiones o registros contextuales; Liu ya figuraba como revisión secundaria. Se archivaron las versiones y las huellas digitales de los cuatro PDF recuperados. El 7 de octubre de 2026 se recuperó el texto completo de Welch [28], conservado como contexto sin nuevas condiciones D90. Once textos basales permanecieron inaccesibles tras los intentos documentados y quedaron fuera de la síntesis cuantitativa, sin imputación de resultados. Su y Sheng se analizaron en versión editorial previa a la publicación definitiva (journal pre-proof). Chen se ordenó por su disponibilidad en línea del 16 de septiembre de 2026 y conservó 2027 como año del volumen.
Buonanno publica D90 de 0,56 y 0,39 mJ/cm² para HCoV-229E y OC43. Los valores de k son 4,1 (IC95% 2,5–4,8) y 5,9 (3,8–7,1) cm²/mJ. Al transformar los límites mediante ln(10)/k se obtienen 0,480–0,921 y 0,324–0,606 mJ/cm². Estos intervalos son transformaciones de los IC de k, no estimaciones independientes de incertidumbre de las D90 redondeadas. [8]
El modelo completo de McDonald (ecuación 4 y S1 Table) usa k=1,24, hombro=6,82, log10 fracción residual=−6,25 y log10 fracción inicial=−0,14. Su D90 para N/N0=0,10 es 8,297 mJ/cm². Al normalizar respecto al intercepto ajustado 0,7244, la dosis relativa es 8,592. La suma hombro+ln(10)/k=8,677 y la dosis por pendiente=1,857 son aproximaciones distintas. No se calcula un IC del ajuste publicado sin su covarianza. La base experimental recuperada a 222 nm (máximo 42,848 mJ/cm²) incorporó el error estándar corregido de 0,17 de S1 E4. Se realizó un ajuste separado no ponderado con covarianza condicional; no reconstruye agrupación biológica ni censura de recuentos. [17]
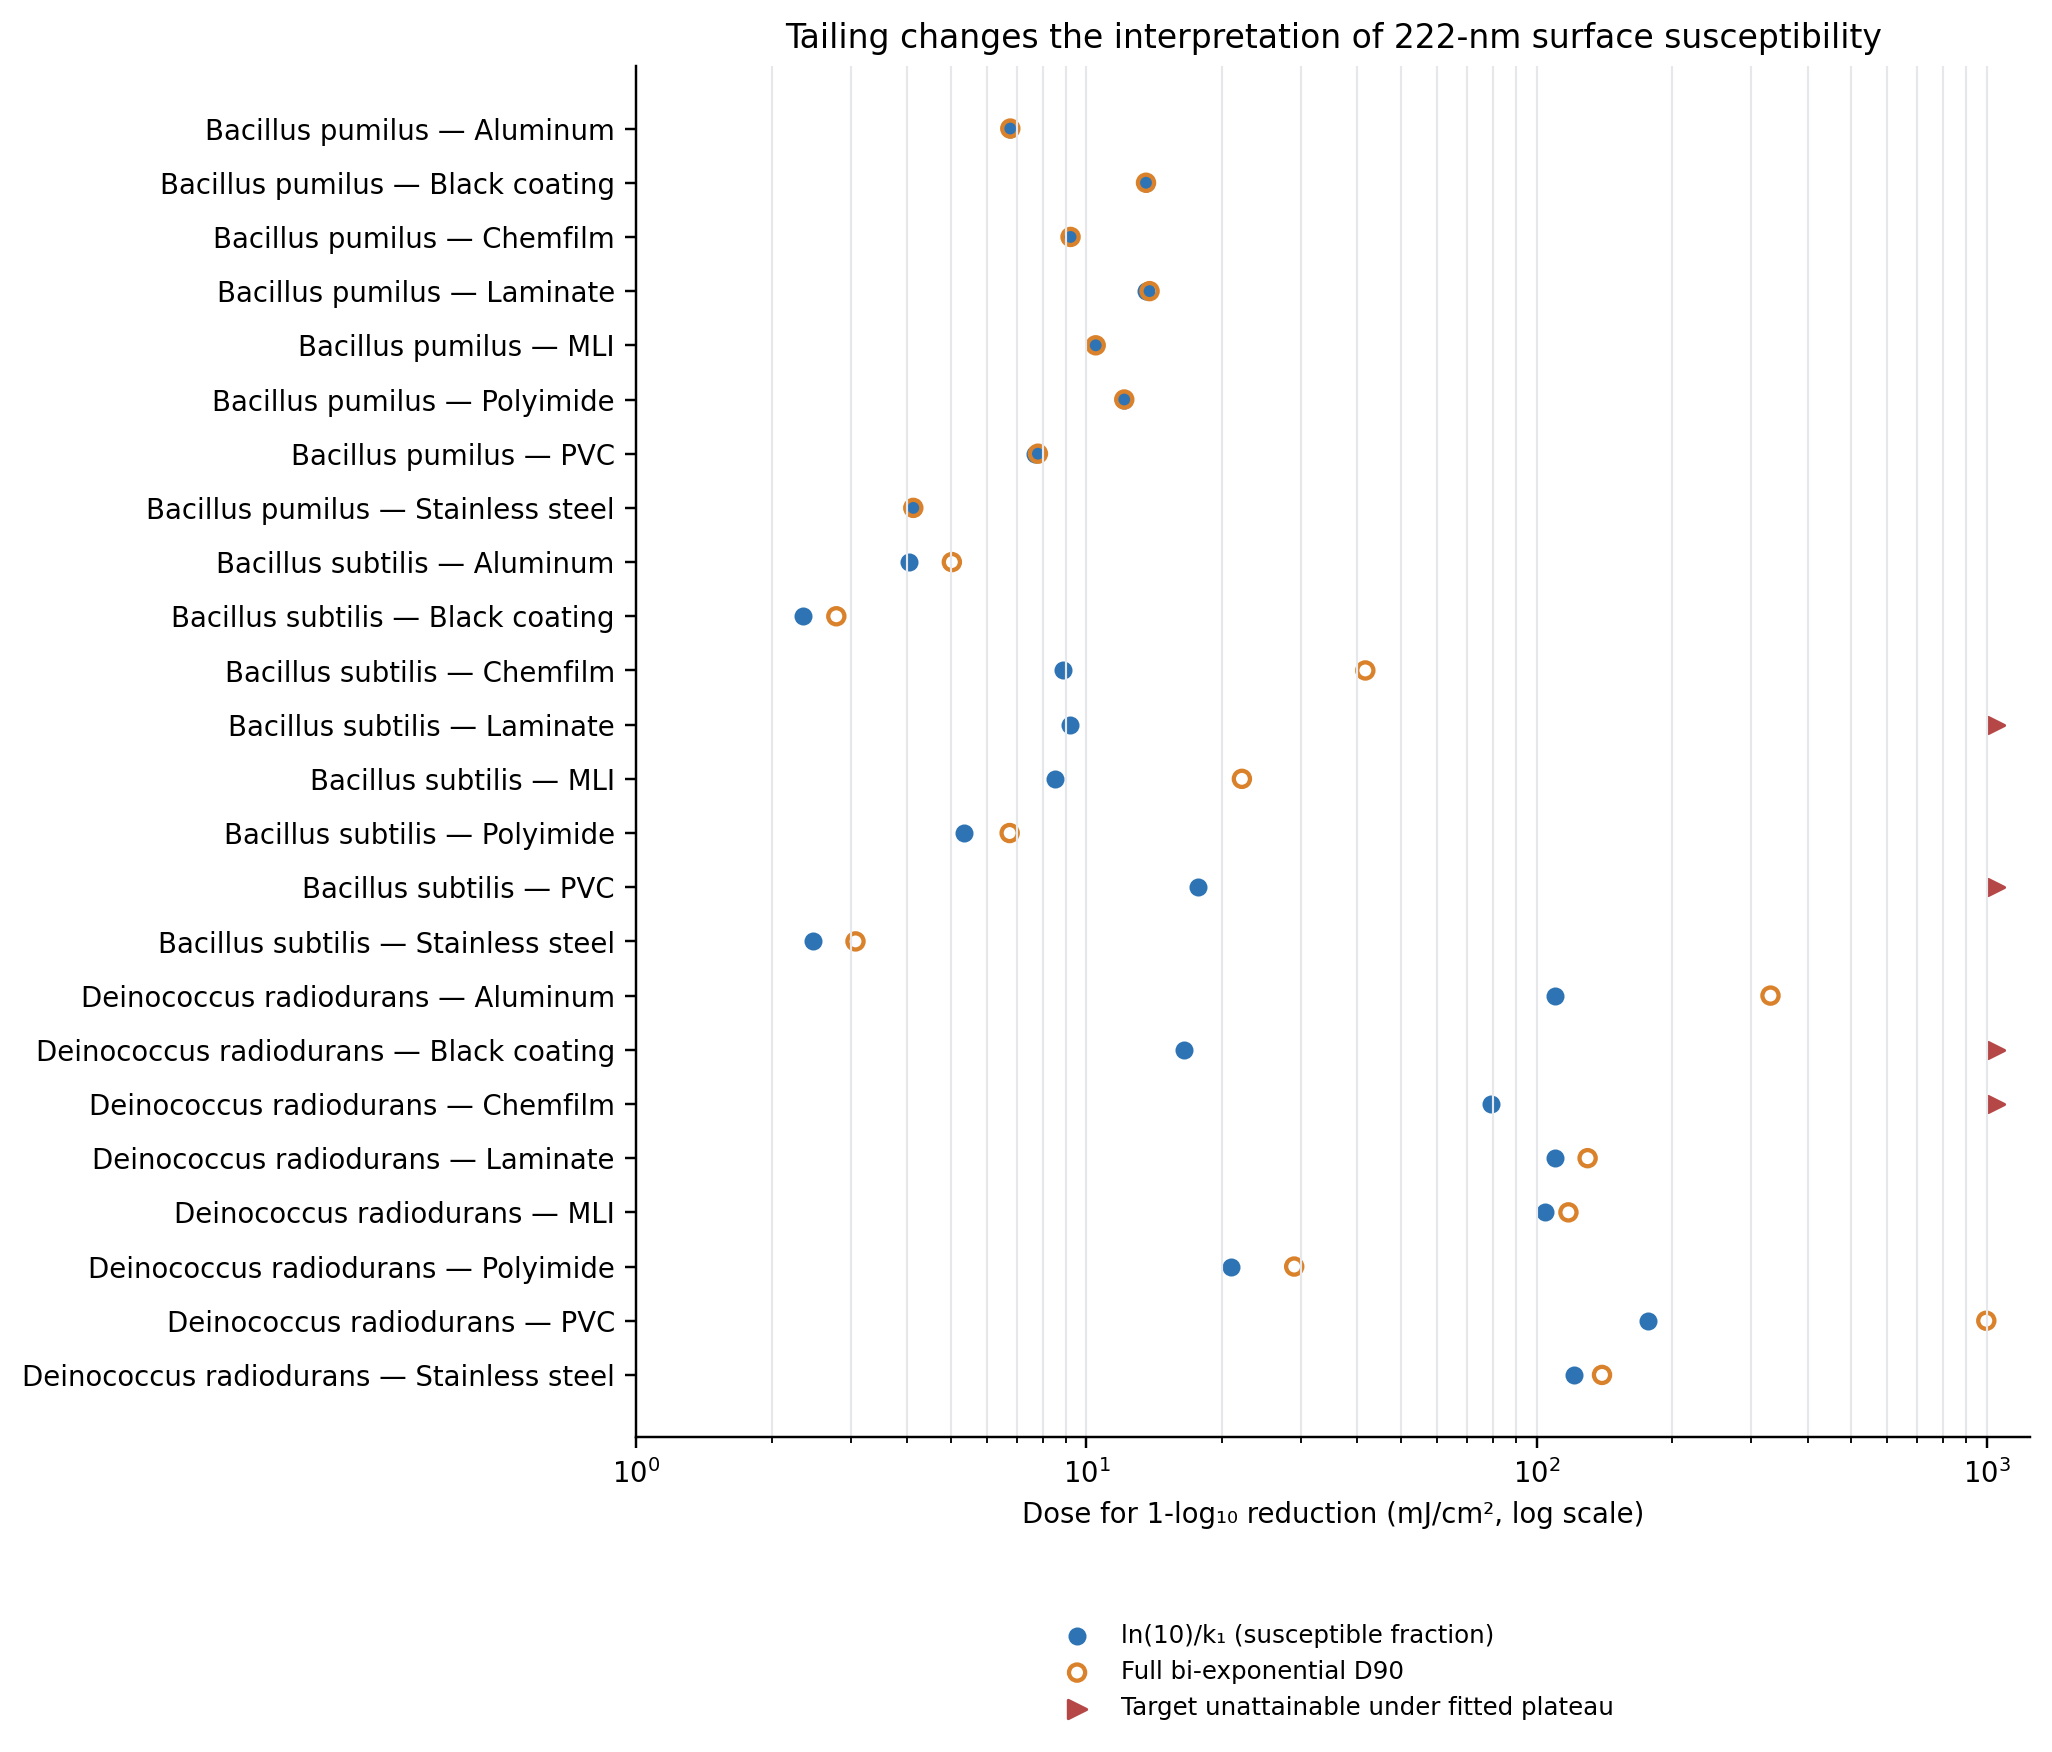
Para Petersen se conserva Table 1 ante discrepancias con la prosa; tres condiciones en aluminio reutilizan datos anteriores. Excluir aluminio da medianas finitas D90 de 10,488, 6,753 y 129,853 para B. pumilus, B. subtilis y D. radiodurans. Se reprodujeron 20 D90 finitas y cuatro inalcanzables; D99: 15 finitas y nueve inalcanzables. Table S1 permite recuperar la dosis máxima en 21 condiciones nuevas: B. pumilus 600 mJ/cm² (acero inoxidable 500), B. subtilis 50 y D. radiodurans 800. El original de 2024 archivado por NASA aporta máximos en aluminio de 300 para B. pumilus y 800 para D. radiodurans; el máximo de B. subtilis sigue desconocido. Se dispone de 23 de 24 máximos por condición. Las soluciones superiores al rango se marcan como extrapolaciones; la covarianza continúa ausente. Los valores altos, incluido 998,07, son soluciones puntuales del modelo, no dosis prácticas validadas. [23,31]
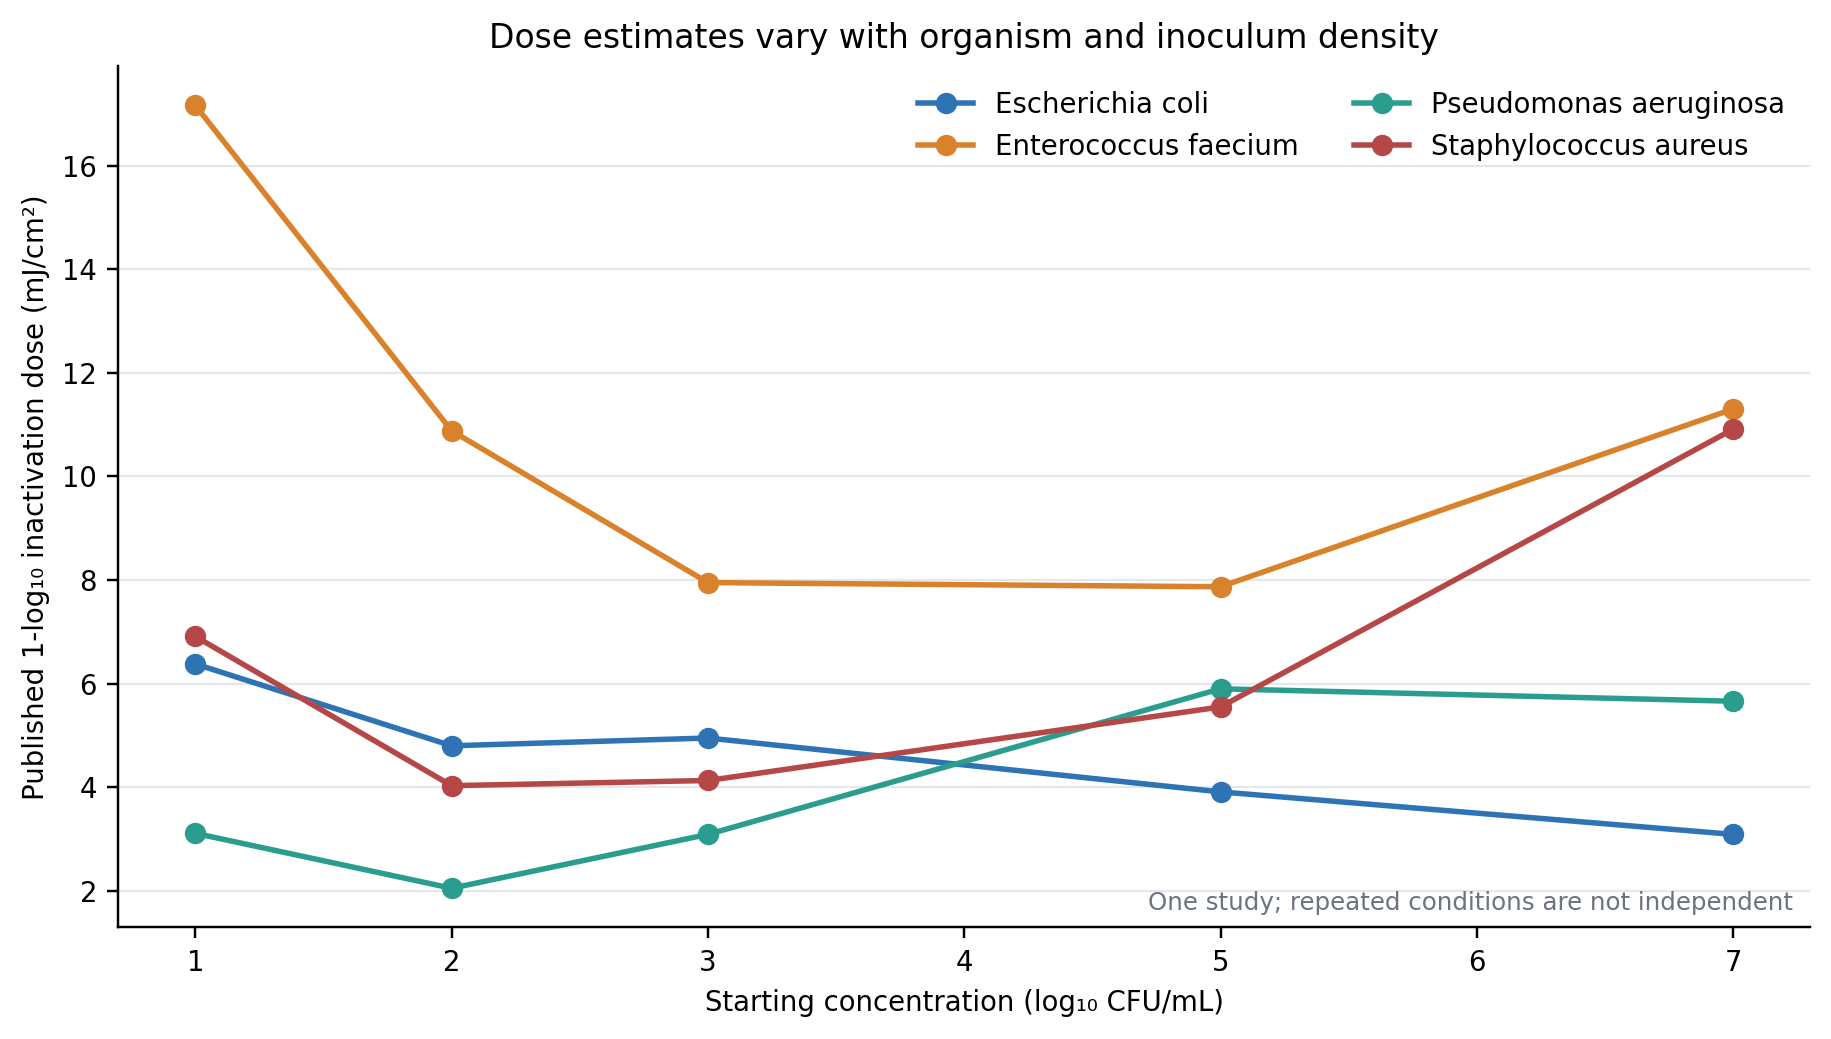
La tabla 3 de Griffin aporta 20 condiciones organismo–densidad; 1LogID es un equivalente derivado de puntos finales, no una D90 ajustada a la curva completa. Pico medido 220,97 nm (nominal 222 nm). La media de S. aureus calculada de las cinco celdas es 6,306 (6,31 redondeada), pero la fuente imprime 6,30. Los localizadores y campos de revisión humana se conservan en el registro de trazabilidad. [16]
Resultados
Mapa de evidencia
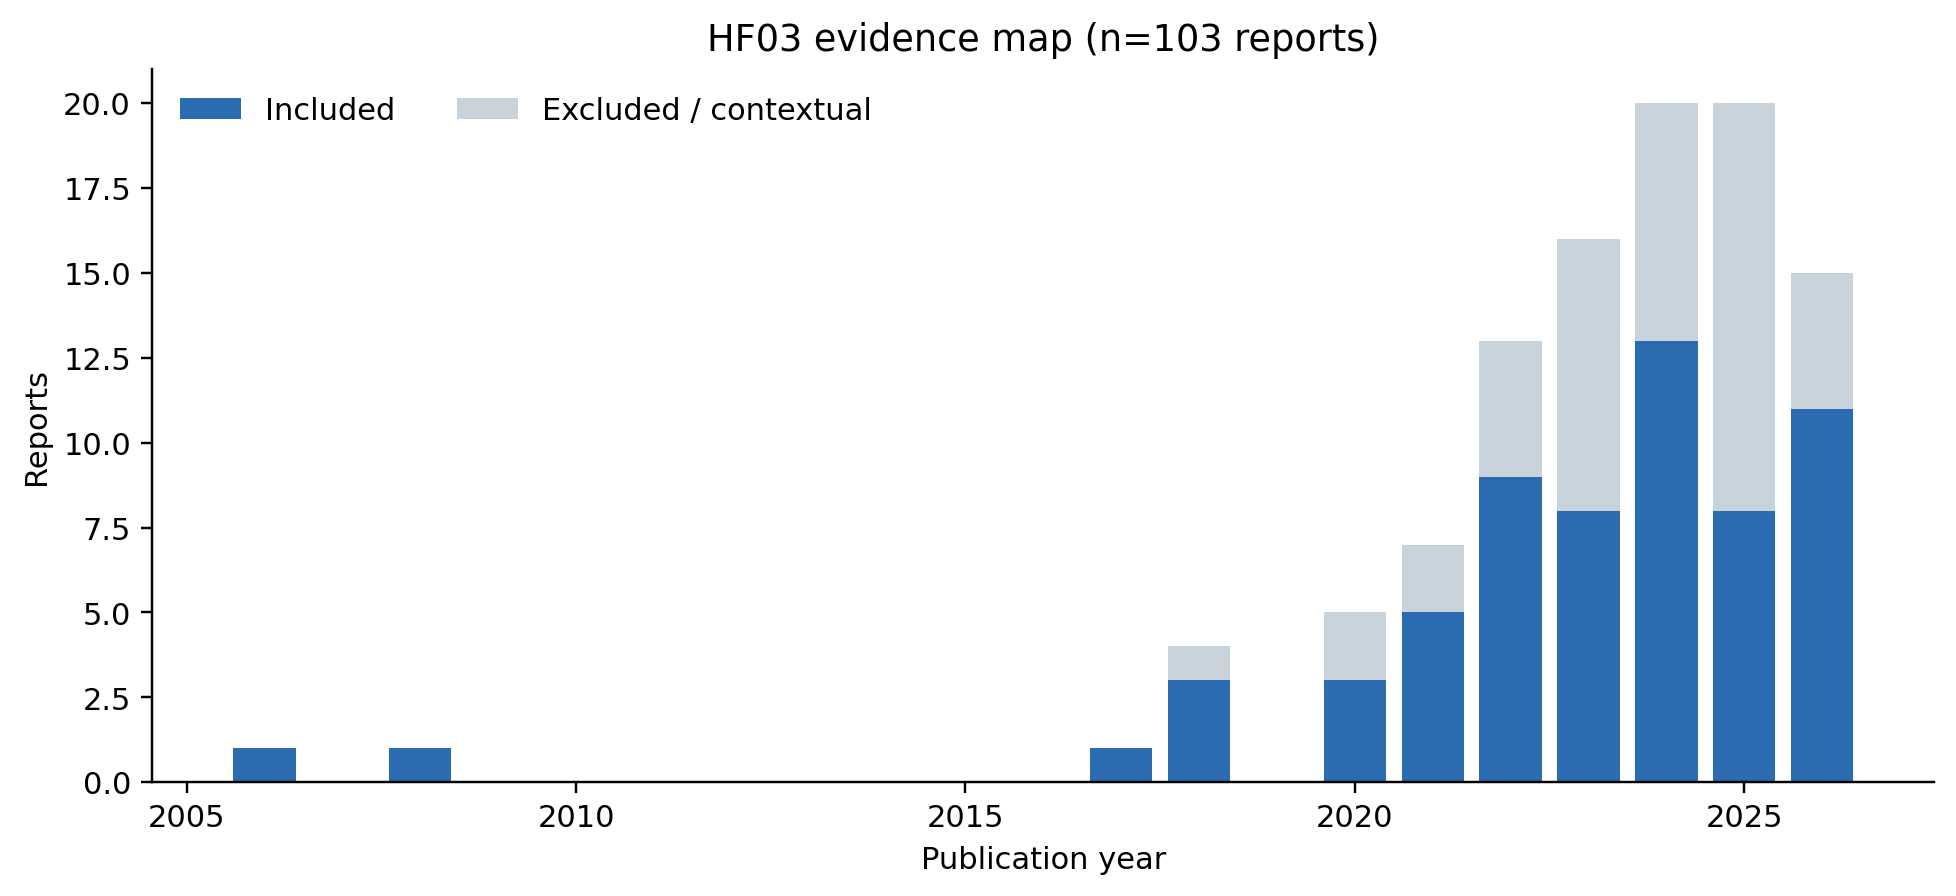
La base integrada contiene 103 informes únicos: 100 basales y tres recuperados en octubre. Se incluyen 63 y se excluyen o conservan como contexto 40. Liu ya estaba en la base como revisión secundaria. La recuperación añade dos informes cuantitativos; el archivo amplio de descubrimiento queda fuera de este corpus. La figura 1 usa 2026 como año online de Chen; su referencia mantiene 2027 como año de volumen. Estos recuentos describen el mapa seleccionado y no un flujo PRISMA exhaustivo.
| Capa | n | Interpretación |
|---|---|---|
| Informes únicos | 103 | 81 semilla + 19 basales + 3 recuperados nuevos |
| Incluidos | 63 | Elegibilidad ratificada por dos revisores |
| Excluidos o contextuales | 40 | Razón explícita en la base |
| Condiciones cuantitativas cotejadas | 51 | Seis informes; 57 estimaciones de modelos |
| Referencias secundarias armonizadas | 33 | Solo contexto; no metaanálisis primario |
| Informes centrados en biofilm | 3 | Insuficientes y heterogéneos para agrupar |
Síntesis por matriz y modelo
| Estrato | Organismo | Matriz | D90 o equivalente (mJ/cm²) | Modelo y alcance |
|---|---|---|---|---|
| Virus envuelto aerotransportado | HCoV-229E / OC43 | Aerosol | 0,56 / 0,39 | D90 directa publicada; IC95% de k transformado por separado |
| Bacteria Gram negativa | E. coli K-12 | Agua | 1,86 por pendiente; 8,30 modelo completo | Geeraerd kmax=1,24±0,08; hombro=6,82±0,51 |
| Bacteria vegetativa | B. subtilis | Superficies secas | 6,94 inicial; 5,89 mediana finita del modelo completo | 8 materiales; D90 completa no identificable en 2/8 |
| Espora bacteriana | B. pumilus | Superficies secas | 9,84 inicial; 9,85 mediana del modelo completo | 8 materiales; rango completo 4,13–13,81 |
| Bacteria extremófila | D. radiodurans | Superficies secas | 107,15 inicial; 134,81 mediana finita completa | 8 materiales; rango finito 28,95–998,07; 2/8 no identificable |
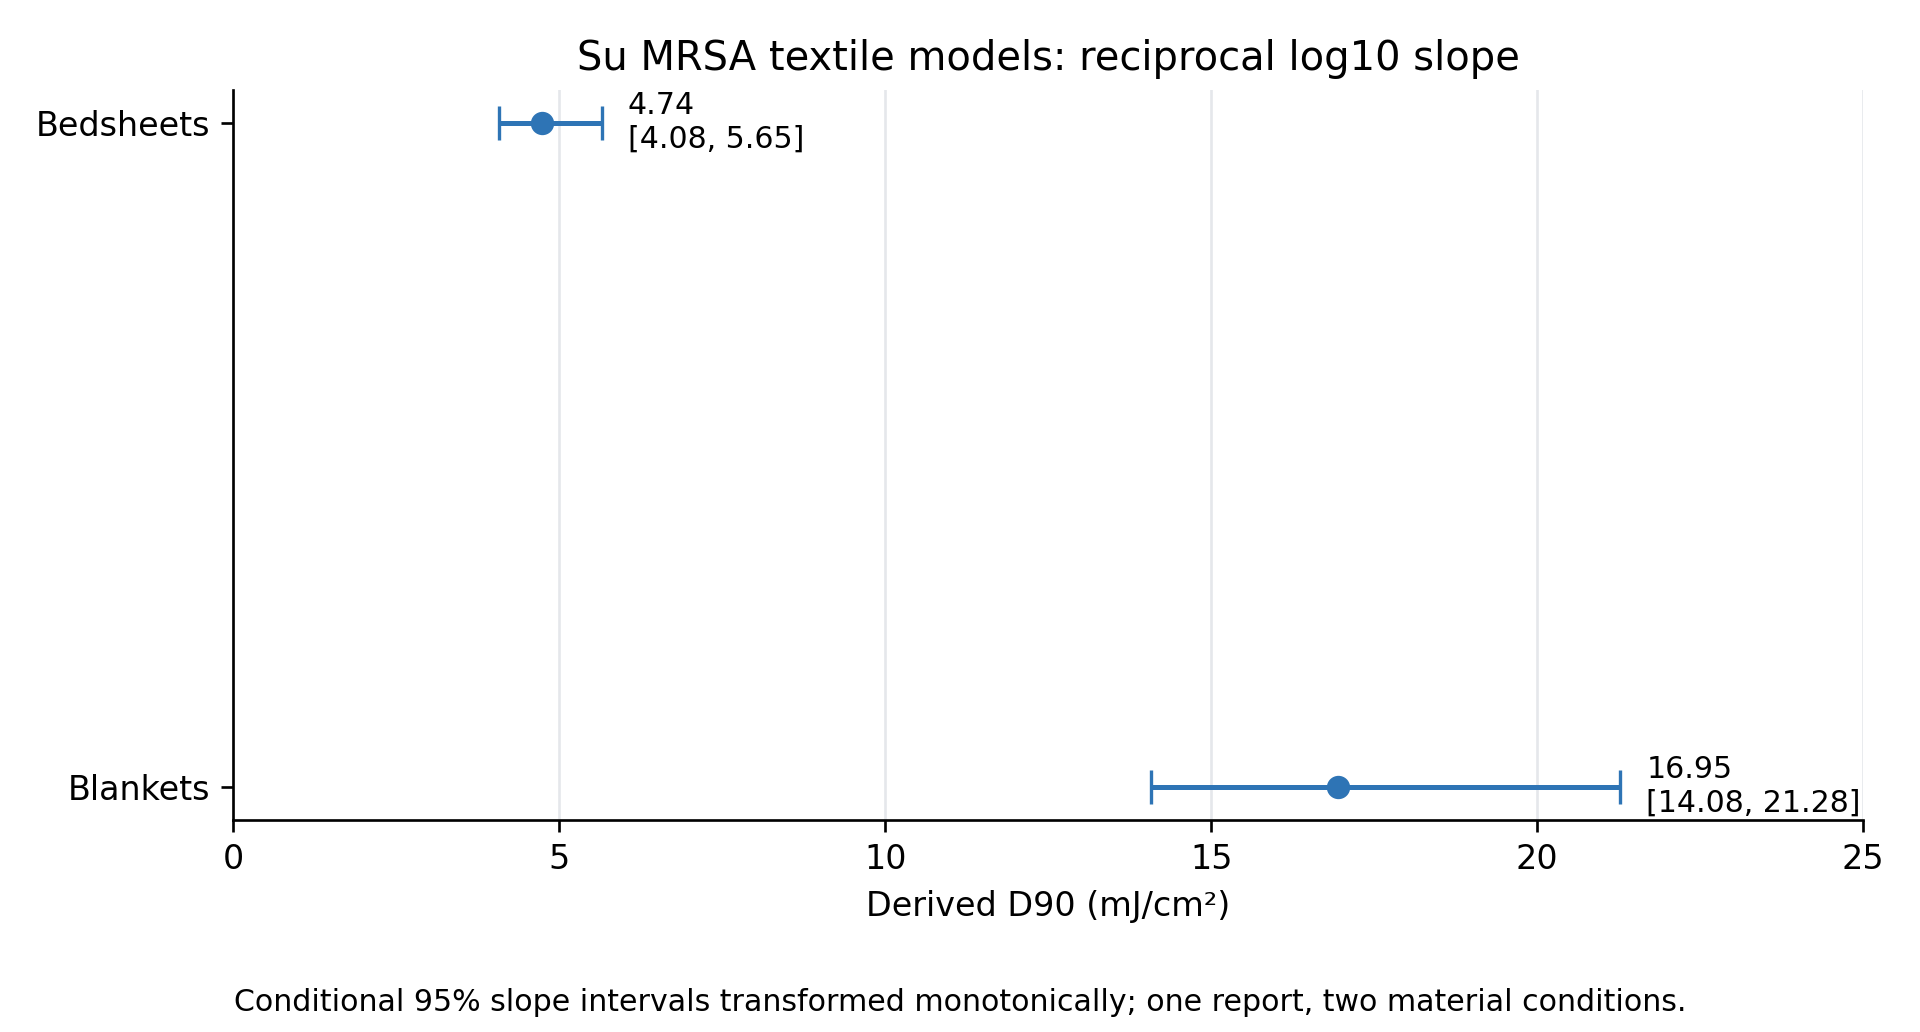
| Bacteria Gram positiva | MRSA | Sábanas textiles | 4,74 (IC95% 4,08–5,65) | Su; pendiente log10; IC condicional |
| Bacteria Gram positiva | MRSA | Mantas textiles | 16,95 (14,08–21,28) | Su; pendiente log10; IC condicional |
| Bacteria vegetativa | S. aureus ATCC 6538 | Tomate; UV aislada | 15,14 nominal | Sheng; bifásico; covarianza ausente |
| Bacteria vegetativa | E. coli ATCC 25922 | Tomate; UV aislada | 15,22 nominal | Sheng; bifásico; covarianza ausente |
La D90 por pendiente (1,86), la aproximación hombro más pendiente (8,68) y la solución del modelo completo (8,30) son estimandos distintos para E. coli acuática. El intercepto ajustado no está fijado en uno. En D. radiodurans sobre superficies, las D90 finitas del modelo completo alcanzaron 998,07 mJ/cm²; dos mesetas hicieron no identificable la reducción de un log.
Especie, inóculo y biofilm
En un único estudio de suspensión, las dosis medias fueron 4,63±1,23 mJ/cm² para E. coli, 11,03±3,78 para E. faecium, 3,96±1,72 para P. aeruginosa y 6,31±2,83 para S. aureus. Las condiciones Gram positivas promediaron 8,67 frente a 4,29 mJ/cm², razón 2,02. Es un contraste descriptivo intraestudio y no una estimación taxonómica general. [16]
Los tres estudios centrados directamente en biofilms difieren en especie, madurez, matriz, arquitectura y desenlace. Demuestran destrucción o reducción en contextos específicos, pero no sostienen un multiplicador universal de resistencia. La composición del inóculo, la saliva, la carga orgánica, el secado y la absorción del material son posibles modificadores del efecto. [13,14,18]
Evidencia recuperada de textiles y alimentos
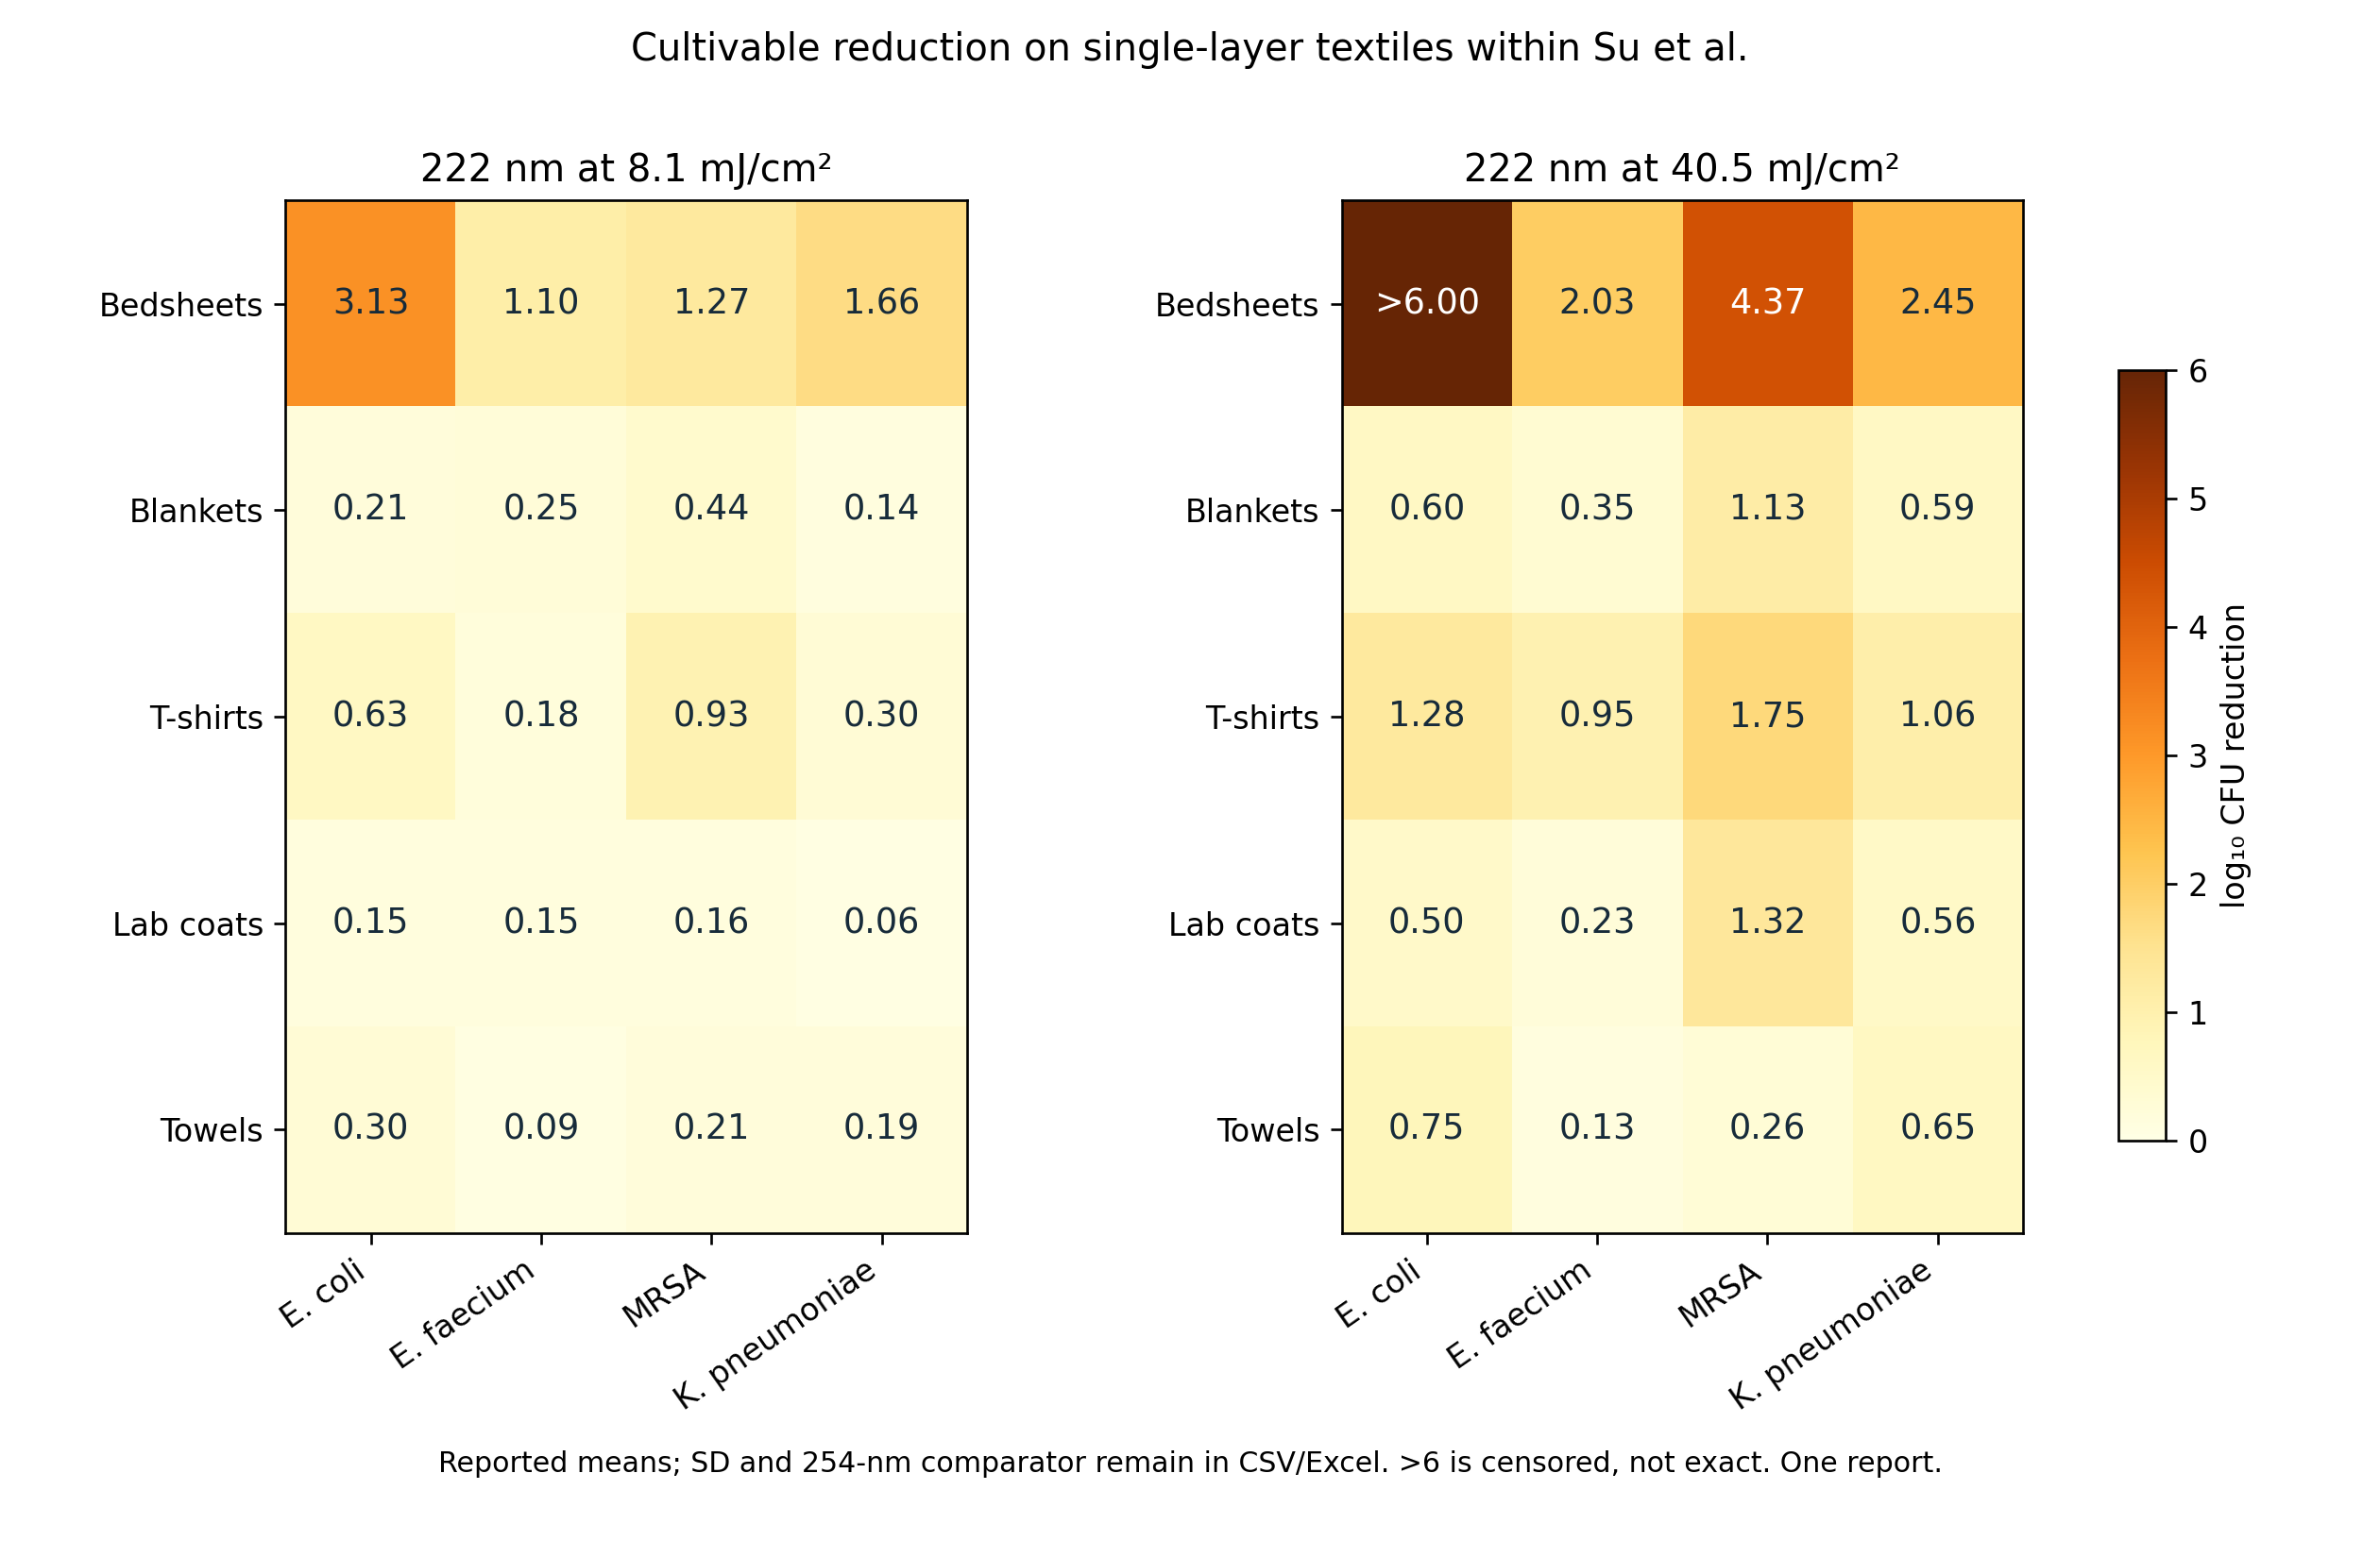
Su et al. [32] comparan reducción cultivable en cuatro organismos y cinco textiles a 8,1 y 40,5 mJ/cm². Las 40 comparaciones apareadas dependen de un único informe. A 40,5 mJ/cm², E. coli en sábanas presenta >6 log10 a 222 nm frente a 3,87±0,10 a 254 nm; se conserva el límite, sin sustituirlo por 6 exacto. Otras comparaciones favorecen 254 nm o dependen de organismo/material. La comparación depende del organismo y el material. Las diez observaciones de MRSA en capas inferiores quedan suplementarias y no se convierten en D90.
Los modelos separados de MRSA en cupones de la sala clínica de Su están forzados al origen y usan pendiente log10: D90=1/k. En sábanas resulta 4,739 mJ/cm² con límites IC95% condicionales transformados 4,082–5,650; en mantas, 16,949 con 14,085–21,277. Se usa la pendiente redondeada de prosa/leyenda y se registra la diferencia de precisión con el gráfico (0,2111 y 0,0592). Los intervalos describen la pendiente ajustada, sin incorporar toda la incertidumbre dosimétrica ni validar desempeño clínico.
Sheng et al. [33] incluyen recuentos cultivables de S. aureus y E. coli en tomates para UV aislada, CP y CP+UV por separado. Con irradiancia incidente 0,92±0,05 mW/cm² y 0–150 s, los ajustes bifásicos UV presentan el mejor R2/RMSE publicado y producen D90 nominal de 15,137 y 15,221 mJ/cm² respecto del N0 ajustado de cada modelo. La selección es descriptiva y post hoc. Los ocho ajustes se retienen como sensibilidad de dos condiciones y no generan IC sin covarianza. La exposición calculada corresponde a la irradiancia incidente; la dosis local en la superficie curva no se determinó. La vida útil y los resultados combinados no pertenecen al efecto aislado de UV.
Fuentes contextuales y secundarias
Chen et al. [34] estudian un proceso far-UVC/Fe(VI)-UF. Una irradiancia incidente de 0,183 mW/cm² durante 30 min corresponde a 329,4 mJ/cm², pero el desenlace viable/recuperación accesible no establece una D90 separable para UV aislada. Los resultados combinados quedan como contexto. Se conservan el 16 de septiembre de 2026 como fecha online y 2027 como año de volumen.
La publicación de Liu et al. [24] es una revisión secundaria. Su OR comparativa agrupada y los desenlaces de daño celular son estimandos distintos de las D90 por matriz de HF03; no se reutilizan como experimento primario, no se convierten en D90 ni prueban seguridad humana. Se archivan 54 referencias para rastreo, diferenciando coincidencia literal y candidata difusa. La elegibilidad y la recuperación se evaluaron por fuente primaria; las referencias de la revisión no se incorporaron automáticamente.
Welch et al. [28] evaluaron bacterias cultivables en una clínica dental ocupada. El informe describe 71 muestras con filtro y 44 con impactador, recogidas en periodos distintos, y una reducción combinada estimada de 39,5% (IC95%: 19–60%). Se conserva como evidencia contextual de un sistema ambiental: las 115 muestras corresponden a una misma investigación, el desenlace no es incidencia de infecciones y la reducción no se convierte en D90. El diseño observacional y la dependencia de ventilación y ocupación limitan la inferencia causal y la extrapolación clínica.
Discusión
La evidencia respalda actividad microbicida de 222 nm, pero no una dosis universal. Los coronavirus envueltos en aerosol muestran alta susceptibilidad en condiciones controladas; las poblaciones secas, extremófilas o protegidas por matrices pueden requerir dosis cientos de veces mayores. Parte de la variabilidad es biológica, y otra parte surge de cómo se calcula y entrega la dosis.
Preservar hombros y colas es decisivo. k1 caracteriza la fracción inicialmente susceptible, no necesariamente la población total. En aplicaciones, el objetivo suele ser la carga recuperable completa, por lo que ignorar una fracción resistente puede sobredimensionar la eficacia esperada. Las reducciones en habitaciones o transporte tampoco equivalen a constantes intrínsecas: dependen de flujo, ocupación, sombras, distancia y tiempo de residencia.
El resultado sobre Gram no establece una ley universal. La especie, la cepa, pigmentos, reparación, esporulación, agregación, composición del medio, uniformidad de fluencia y recuperación del ensayo pueden dominar la respuesta. Los estudios mecanísticos de 2025–2026 apoyan daño proteico y supresión de reparación a 222 nm, pero esos mecanismos no eliminan el sombreado óptico. [25]
Aporte metodológico y relación con otros estudios
Esta síntesis aporta estratificación por matriz, evaluación dosimétrica y soluciones de curvas completas que conservan hombros, colas y la agrupación experimental. Estas características complementan el experimento y revisión de Griffin, la comparación de longitudes de onda de Liu la revisión mecanística de Prismasari y Kang y la síntesis de Hessling y colaboradores sobre biofilms. La incompatibilidad de una D90 transversal constituye un resultado metodológico de la síntesis, acompañado de estimaciones específicas y trazables. [16,24,29,30]
HF03 comparte con HF06 los 81 informes de la semilla y 46 de las 63 inclusiones actuales. Las 47 condiciones cuantitativas basales provienen de cuatro informes ya indexados en HF06; las cuatro condiciones nuevas provienen de Su y Sheng y están identificadas por separado. Los tres resultados en aluminio de Petersen reutilizan una investigación previa y no aumentan la independencia. Se mantienen ocho coincidencias DOI con P110: cinco elegibles y tres excluidas. El registro exacto acompaña la evaluación de redundancia y reutilización de datos. El artículo de Welch de 2018 cuenta con una corrección publicada en 2021, que se conserva vinculada a la fuente original [7,35].
Alcance y limitaciones
La síntesis cuantitativa se circunscribe a 51 condiciones de seis informes, con 57 estimaciones agrupadas por condición. El mapa procede de la semilla HF06 y no constituye la evaluación completa de las 21.904 entradas del archivo de descubrimiento. Once textos basales no recuperados quedaron fuera de la síntesis D90, sin imputación de resultados. Su y Sheng se analizaron en versión journal pre-proof y Welch [28] como contexto. La disponibilidad parcial de suplementos, datos crudos, covarianza de Sheng y detalles dosimétricos y de replicación limita la evaluación de incertidumbre y sesgo de publicación. Las 33 filas secundarias se mantienen como contexto. Estas condiciones delimitan las comparaciones al material experimental documentado y no permiten inferencias clínicas o de seguridad humana.
Conclusiones
El modelo de dosis–respuesta cambia sustancialmente la estimación de inactivación: en el caso de McDonald, la D90 fue 1,86 mJ/cm² al usar la pendiente y 8,30 mJ/cm² al conservar el modelo completo, una diferencia de aproximadamente 4,46 veces. En 4 de las 24 condiciones de Petersen, la meseta ajustada impidió obtener una D90 finita. Estas diferencias son consecuencias analíticas de hombros y colas, y condicionan la comparación entre estudios. [17,23,31]
El mapa integrado reúne 103 informes, 63 inclusiones y 51 condiciones cuantitativas de seis informes. Sus 57 estimaciones conservan la agrupación experimental, la matriz, la base logarítmica y la sensibilidad al modelo. El resultado central es que la elección del modelo y la conservación de hombros y colas afectan materialmente la estimación de dosis. La síntesis proporciona valores específicos de sus condiciones y una ruta de reproducción; su alcance no incluye una dosis universal, superioridad general de una longitud de onda ni una indicación terapéutica clínica.
Declaraciones
Ética: Análisis secundario de evidencia publicada y agregada, sin nuevas intervenciones en humanos o animales ni recopilación de datos individuales identificables.
Financiamiento: Recursos internos de MedETechni SpA, empleador de los autores y entidad con interés comercial en tecnología UVC.
Conflictos de interés: Kevin V. Morales Chamorro es fundador, CEO y accionista de MedETechni SpA, desarrolladora de tecnologías UVC, incluido Virgilio Rays, y solicitante de la patente chilena 202602357 y PCT/CL2026/050115. Gricell J. Báez Arévalo es CMO de MedETechni SpA. Se declaran estos intereses comerciales y de propiedad intelectual.
Manuscritos relacionados y reutilización de datos: HF03 reutiliza HF06 como semilla bibliográfica de 81 informes y comparte ocho DOI con P110. HF06 evalúa dosimetría y calidad de reporte; P110 mapea tecnologías sanitarias convencionales de 253,7–254 nm; HF03 evalúa eficacia microbiana a 222 nm por matriz, estado y modelo. El registro de solapamientos acompaña el expediente y documenta las coincidencias para identificar la evidencia compartida y diferenciar los objetivos de cada manuscrito.
Disponibilidad de datos: La base XLSX y el paquete reproducible contienen decisiones de selección, extracción, cálculos, búsquedas, enlaces y código con el estado de verificación de sus versiones archivadas. El registro v1.10 de fuentes e identificadores complementa la base XLSX v1.5, conservada sin cambios numéricos. Dos revisores ratificaron la selección y la extracción utilizadas en el análisis. El suplemento identifica los once textos no recuperados, sus DOI y su relación con la síntesis.
Uso de inteligencia artificial. Se utilizó inteligencia artificial generativa basada en un modelo de lenguaje, mediante Codex (OpenAI; modelo GPT-6.1 Sol) para el triaje documental, la armonización de datos, la programación y la redacción. La revisión humana de la selección y la extracción se describe en Métodos. Los autores conservan la responsabilidad sobre la interpretación y el contenido final.
Distribución de contribuciones CRediT: K.V.M.C.—conceptualización, metodología, investigación, curación de datos, análisis formal, software, visualización, redacción inicial, administración y financiamiento. G.J.B.A.—metodología, interpretación clínica, validación, investigación, revisión y supervisión.
Referencias
35- Page MJ, McKenzie JE, Bossuyt PM, Boutron I, Hoffmann TC, Mulrow CD, et al. The PRISMA 2020 statement: an updated guideline for reporting systematic reviews. BMJ. 2021;372:n71. doi:10.1136/bmj.n71.
- Rethlefsen ML, Kirtley S, Waffenschmidt S, Ayala AP, Moher D, Page MJ, et al. PRISMA-S: an extension to the PRISMA Statement for Reporting Literature Searches in Systematic Reviews. Syst Rev. 2021;10(1):39. doi:10.1186/s13643-020-01542-z.
- Campbell M, McKenzie JE, Sowden A, Katikireddi SV, Brennan SE, Ellis S, et al. Synthesis without meta-analysis (SWiM) in systematic reviews: reporting guideline. BMJ. 2020;368:l6890. doi:10.1136/bmj.l6890.
- Clauß M. Higher effectiveness of photoinactivation of bacterial spores, UV resistant vegetative bacteria and mold spores with 222 nm compared to 254 nm wavelength. Acta Hydrochim Hydrobiol. 2006;34(6):525–532. doi:10.1002/aheh.200600650.
- Matafonova GG, Batoev VB, Astakhova SA, Gómez M, Christofi N. Efficiency of KrCl excilamp (222 nm) for inactivation of bacteria in suspension. Lett Appl Microbiol. 2008;47(6):508–513. doi:10.1111/j.1472-765X.2008.02461.x.
- Buonanno M, Ponnaiya B, Welch D, Stanislauskas M, Randers-Pehrson G, Smilenov L, et al. Germicidal Efficacy and Mammalian Skin Safety of 222-nm UV Light. Radiat Res. 2017;187(4):493–501. doi:10.1667/RR0010CC.1.
- Welch D, Buonanno M, Grilj V, Shuryak I, Crickmore C, Bigelow AW, et al. Far-UVC light: A new tool to control the spread of airborne-mediated microbial diseases. Sci Rep. 2018;8(1):2752. doi:10.1038/s41598-018-21058-w.
- Buonanno M, Welch D, Shuryak I, Brenner DJ. Far-UVC light (222 nm) efficiently and safely inactivates airborne human coronaviruses. Sci Rep. 2020;10(1):10285. doi:10.1038/s41598-020-67211-2.
- Narita K, Asano K, Naito K, Ohashi H, Sasaki M, Morimoto Y, et al. Ultraviolet C light with wavelength of 222 nm inactivates a wide spectrum of microbial pathogens. J Hosp Infect. 2020;105(3):459–467. doi:10.1016/j.jhin.2020.03.030.
- Kitagawa H, Nomura T, Nazmul T, Kawano R, Omori K, Shigemoto N, et al. Effect of intermittent irradiation and fluence-response of 222 nm ultraviolet light on SARS-CoV-2 contamination. Photodiagnosis Photodyn Ther. 2021;33:102184. doi:10.1016/j.pdpdt.2021.102184.
- Eadie E, Hiwar W, Fletcher L, Tidswell E, O’Mahoney P, Buonanno M, et al. Far-UVC (222 nm) efficiently inactivates an airborne pathogen in a room-sized chamber. Sci Rep. 2022;12(1):4373. doi:10.1038/s41598-022-08462-z.
- Welch D, Buonanno M, Buchan AG, Yang L, Atkinson KD, Shuryak I, et al. Inactivation Rates for Airborne Human Coronavirus by Low Doses of 222 nm Far-UVC Radiation. Viruses. 2022;14(4):684. doi:10.3390/v14040684.
- Ma B, Seyedi S, Wells E, McCarthy D, Crosbie N, Linden KG. Inactivation of biofilm-bound bacterial cells using irradiation across UVC wavelengths. Water Res. 2022;217:118379. doi:10.1016/j.watres.2022.118379.
- Chen H, Moraru CI. Exposure to 222 nm far UV-C effectively inactivates planktonic foodborne pathogens and inhibits biofilm formation. Innov Food Sci Emerg Technol. 2023;87:103411. doi:10.1016/j.ifset.2023.103411.
- Lorenzo-Leal AC, Tam W, Kheyrandish A, Mohseni M, Bach H. Antimicrobial Activity of Filtered Far-UVC Light (222 nm) against Different Pathogens. Biomed Res Int. 2023;2023:2085140. doi:10.1155/2023/2085140.
- Griffin DT, Gourlay T, Maclean M. The Antibacterial Efficacy of Far-UVC Light: A Combined-Method Study Exploring the Effects of Experimental and Bacterial Variables on Dose–Response. Pathogens. 2024;13(8):698. doi:10.3390/pathogens13080698.
- McDonald D, Ma D, Hull NM. 222 nm causes greater protein damage and repair inhibition of E. coli than 254 nm for water disinfection. PLOS Water. 2024;3(7):e0000238. doi:10.1371/journal.pwat.0000238.
- Nishikawa J, Fujii T, Fukuda S, Yoneda S, Tamura Y, Shimizu Y, et al. Far-ultraviolet irradiation at 222 nm destroys and sterilizes the biofilms formed by periodontitis pathogens. J Microbiol Immunol Infect. 2024;57(4):533–545. doi:10.1016/j.jmii.2024.05.005.
- Huang JR, Yang TW, Hsiao YI, Fan HM, Kuo HY, Hung KH, et al. Far-UVC light (222 nm) efficiently inactivates clinically significant antibiotic-resistant bacteria on diverse material surfaces. Microbiol Spectr. 2024;12(12):e04251-23. doi:10.1128/spectrum.04251-23.
- Buonanno M, Kleiman NJ, Welch D, Hashmi R, Shuryak I, Brenner DJ. 222 nm far-UVC light markedly reduces the level of infectious airborne virus in an occupied room. Sci Rep. 2024;14(1):6722. doi:10.1038/s41598-024-57441-z.
- Ratliff K, Calfee MW, Abdel-Hady A, Monge M, Aslett D, Oudejans L. Impact of inoculum composition on bacteria and bacteriophage UVC inactivation at 222 nm and 254 nm. Lett Appl Microbiol. 2025;78(7):ovaf090. doi:10.1093/lambio/ovaf090.
- Monika, Damle EA, Kondabagil K, Kunwar A. Comparative study of inactivation efficacy of far-UVC (222 nm) and germicidal UVC (254 nm) radiation against virus-laden aerosols of artificial human saliva. Photochem Photobiol. 2025;101(6):1415–1428. doi:10.1111/php.14062.
- Petersen C, Urbano J, Hinzer A, Shuryak I, Wang E, Hashmi R, et al. Susceptibility of microbes to far-UVC light (222 nm) on spacecraft and cleanroom surfaces. Microbiol Spectr. 2025;13(12):e02276-25. doi:10.1128/spectrum.02276-25.
- Liu Q, Wang X, Jiang L, Fan Y, Gao F, Wu Y, et al. Disinfection efficacy and safety of 222-nm ultraviolet C compared with 254-nm ultraviolet C: systematic review and meta-analysis. J Hosp Infect. 2025;161:55–67. doi:10.1016/j.jhin.2025.04.004.
- Jing ZB, Wang WL, Wu QY, Chen Z, Wu YP, Peng L, et al. Far-UVC (222 nm) Suppresses Bacterial UV Resistance and Repair through Inhibition of DNA Repair Pathways. Environ Sci Technol. 2026;60(1):1368–1377. doi:10.1021/acs.est.5c09803.
- Buonanno M, Welch D, Wang E, Shuryak I, de Muro MA, Brenner DJ. Further insights on the antimicrobial effectiveness of far-UVC light. Photochem Photobiol. 2026 abr 29. Publicación anticipada en línea. doi:10.1111/php.70104.
- Vincent RL, Factor SH, Rivera Boudla L, Atkinson D, McDevitt JJ, Camins BC. Efficacy of continuous UV-C 222 exposure of Candida auris, methicillin-resistant Staphylococcus aureus, and T1 bacteriophage at two soil levels in hospital patient rooms. Infect Control Hosp Epidemiol. 2026;47(5):509–516. doi:10.1017/ice.2026.10414.
- Welch D, Buonanno M, Tang Z, Shuryak I, Hashmi R, Belenky V, et al. 222 nm far-UVC to inactivate airborne bacteria in an occupied dental clinic. J Hosp Infect. 2026;168:105–113. doi:10.1016/j.jhin.2025.11.015.
- Prismasari S, Kang JY. Determinants of Microbial Resistance to Far-UVC 222 nm in Healthcare Pathogens: A Narrative Review. Life (Basel). 2026;16(5):842. doi:10.3390/life16050842.
- Hessling M, Meulebroeck W, Alsanius B. A Collection and Analysis of Simplified Data for a Better Understanding of the Complex Process of Biofilm Inactivation by Ultraviolet and Visible Irradiation. Microorganisms. 2025;13(9):2048. doi:10.3390/microorganisms13092048.
- Petersen C, Buonanno M, Guan L, Hinzer A, Urbano J, Hashmi R, et al. Susceptibility of extremophiles to far-UVC light for bioburden reduction in spacecraft assembly facilities. Life Sci Space Res. 2024;41:56–63. doi:10.1016/j.lssr.2024.01.006.
- Su XW, Tan GYA, Ceesay K, Li WS, Lai ACK. Far-UVC and UVC disinfection of healthcare fabrics: from laboratory evidence to clinical application. Results Eng. 2026;32:113174. doi:10.1016/j.rineng.2026.113174. Versión evaluada: preprueba editorial.
- Sheng X, Qian J, Zhang Q, Zeb A, Zhao L, Zhang J, et al. Application of cold plasma combined with far ultraviolet: A technique for microbial inactivation and quality improvement of cherry tomatoes. J Future Foods. 2026 sep. Publicación anticipada en línea. doi:10.1016/j.jfutfo.2026.09.027.
- Chen K, Sun Z, Huang J, Huang X, Li P, Jin Y, et al. Cascading purification of algal-laden surface water by Far-UVC/Fe(VI)-UF: Overcoming the organic matter transformation-water quality risk trade-off. Water Res. 2027;308(Pt B):126976. doi:10.1016/j.watres.2026.126976. Publicado en línea el 16 de septiembre de 2026; versión evaluada: preprueba editorial.
- Welch D, Buonanno M, Grilj V, Shuryak I, Crickmore C, Bigelow AW, et al. Author Correction: Far-UVC light: A new tool to control the spread of airborne-mediated microbial diseases. Sci Rep. 2021;11(1):18122. doi:10.1038/s41598-021-97682-w.
Citar este artículo
Kevin Virgilio Morales Chamorro; Gricell Jeraldina Báez Arévalo. Inactivación microbiana por far-UVC a 222 nm: revisión sistemática y síntesis de dosis-respuesta en aire, agua, superficies y biopelículas. MedETechni Journal of Translational Research. 2026;1:e0002. https://medetechni.com/journal/articles/e0002
RIS para Zotero, Mendeley y EndNote. Los archivos citan el original en español.Archivos y materiales de publicación
Conservá el artículo completo, sus figuras y los metadatos para consulta y cita.
El paquete incluye los textos ES/EN, ambos PDF, figuras, metadatos, referencias y un manifiesto SHA-256. Es un archivo de publicación; los datos primarios y suplementos de investigación se rigen por la declaración de disponibilidad del artículo.Consultar sobre datos o suplementos de este estudioHistorial y versiones
- Aceptación comunicada
- Publicación del original español
- Actualización del título
- Texto HTML y traducción inglesa
- PDF inglés y archivo de publicación
La aceptación del 8 de octubre fue comunicada y ratificada por el responsable de la revista. Los informes de evaluación, la correspondencia y la atribución de decisiones se conservan en el expediente editorial confidencial. El historial público muestra las fechas documentadas; no se reconstruye una fecha de recepción que no conste en el registro.
Consultar el PDF español original
Se conserva el PDF original, con su paginación y composición publicadas. La traducción inglesa se descarga por separado.